
伯氏疏螺旋体(Borrelia burgdorferi)
物种名:伯氏疏螺旋体
拉丁学名:Borrelia burgdorferi
分类学地位:细菌界Bacteria;螺旋体门Spirochaetes
螺旋体纲Spirochaetia;螺旋体目Spirochaetales;
伯氏螺旋体科Borreliae;伯氏螺旋体属Borrelia
伯氏疏螺旋体(Borrelia burgdorferi,B. burgdorferi)是伯氏螺旋体属的代表菌种,主要通过被感染的蜱虫叮咬传播给人类。该菌是引起莱姆病(Lyme disease)的病原菌,莱姆病是一种常见的传染性疾病,主要症状包括皮疹、关节痛、发热等,严重时可引发神经系统和心血管系统的并发症。B. burgdorferi的传播范围广泛,尤其在北美和欧洲地区,已成为公共卫生领域的重要关注对象。
1.1生物学特性
1.1.1生活史
伯氏疏螺旋体的生活史是典型的“蜱—脊椎动物”循环,需在蜱与脊椎动物宿主间完成水平传播:初夏病原体从受感染的若虫传播到小鼠,夏末从受感染小鼠传播到幼虫,随后幼虫蜕皮成受感染若虫,次年再次重复该周期。在蜱体内,螺旋体中肠内表达外表面蛋白A(OspA);当病原体游走到蜱唾液腺时,OspC表达上调,并与蜱唾液腺蛋白Salp15结合,这一过程是感染哺乳动物宿主所必需的。注入人体皮肤后,螺旋体下调OspC并上调VlsE脂蛋白——VlsE可发生广泛的抗原变异以逃避宿主免疫,这是螺旋体长期存活所必需的。螺旋体随后在皮肤中向外迁移形成游走性红斑(EM),并可经血液或淋巴播散至其他器官,且常与心脏、神经系统或关节细胞外基质中的胶原纤维结合,从而定植于关节、心脏、神经系统等部位[1]。
1.1.2形态学特征
伯氏疏螺旋体为螺旋状细菌,其细胞结构包括表层、内外膜、鞭毛和原生质柱,菌体尺寸约为(0.2-0.5)μm×(10-30)μm。鞭毛为7-11根周质鞭毛,位于内外膜之间的质周间隙,呈波浪状或螺旋状形态,是该螺旋体的运动器官。鞭毛的功能之一是避免宿主免疫系统对病原体的伤害。其外膜含有脂蛋白微粒,但缺乏脂多糖,与典型的革兰阴性菌有所不同[2]。
图1 伯氏疏螺旋体在暗场显微镜中的外观图片[3]
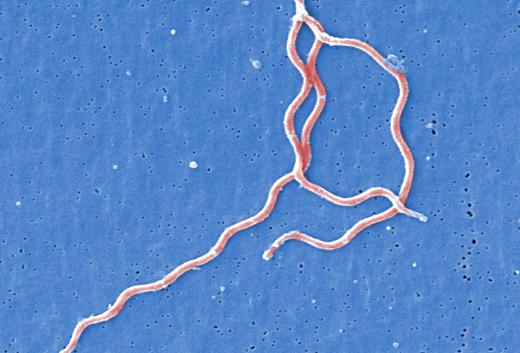
图2 伯氏疏螺旋体的扫描电子显微镜(SEM)图片[4]
1.1.3生化特征
伯氏疏螺旋体代谢能力非常受限,其基因组仅编码糖酵解途径的酶,而缺乏三羧酸循环和氧化磷酸化。因此其ATP完全依赖糖酵解产生;由于缺乏丙酮酸脱氢酶与丙酮酸氧化酶,丙酮酸唯一的去向是经乳酸脱氢酶转化为乳酸,故其主要代谢终产物为乳酸。此外,该菌不编码任何从头合成脂肪酸、氨基酸或核苷酸的完整途径,因而完全依赖从宿主或培养基中转运所需的营养物与辅因子,并依赖若干回收再利用(salvage)途径获取构建核酸等的前体[5]。
1.1.4分子生物学特征
伯氏疏螺旋体的基因组呈高度分段结构,由1条长约910 kb的线性染色体和17个线状或环状质粒组成,质粒总长超过533 kb。其染色体携带DNA复制、转录、翻译、溶质运输及能量代谢等核心管家基因,但缺乏细胞合成相关基因。质粒上约430个基因大多功能未知,其中约39%可归类为同源基因并形成47个基因家族,这些质粒基因被认为可能与抗原变异或免疫逃逸有关[6]。
1.2分布、传播与致病性
1.2.1分布与传播
伯氏疏螺旋体病的分布与其传播媒介硬蜱的分布密切相关:在美国东部及中西部(马萨诸塞至马里兰、威斯康星与明尼苏达)以达敏硬蜱为主要媒介,太平洋沿岸(加利福尼亚、俄勒冈)由太平洋硬蜱传播;在欧洲由蓖子硬蜱传播,见于英国至斯堪的纳维亚及俄罗斯欧洲区域;在俄罗斯亚洲区域、中国和日本则以全钩硬蜱为主要媒介。本病经感染蜱虫叮咬传播,蜱生活史三期各吸血一次,其中若虫在次年春、夏初吸血,是夏初将疾病传给人类的主要阶段,而成虫虽在秋季吸血,但因体型大、易于被发现,传播风险较低;此外,传播本病的硬蜱亦可携带并传播其他病原体,在美国达敏硬蜱还同时传播巴贝西虫病和埃里希体病[7]。
1.2.2致病性
伯氏疏螺旋体所致莱姆病的临床表现呈阶段性进展。早期局灶期为游走性红斑;播散期可表现为多发性红斑、淋巴瘤、神经莱姆病和心肌炎等;慢性期则主要表现为慢性萎缩性关节炎和神经系统损伤。此外,伯氏疏螺旋体(sensu lato)包含森苏疏螺旋体、阿氏疏螺旋体和加里尼疏螺旋体等多种基因型,不同基因型引起的临床表现差异显著[8]。
1.3检测方法
(1)血清学检测:先以ELISA或IFA作初筛,初筛阳性标本再用Western blot确诊;阳性标准为螺旋体特异抗体阳性,或双份血清抗体滴度增高4倍及以上。特异性IgM于游走性红斑后2-4周出现、6-8周达高峰;IgG于病后6-8周升高、4-6个月达高峰并可维持数年。其局限在于感染2周内可假阴性,幼年、中老年及免疫异常(如风湿病、肿瘤、器官移植)者亦可出现假阴/假阳性[9]。
(2)分子生物学方法:Courtney[10]等根据伯氏疏螺旋体23S rRNA保守基因序列设计特异性引物与探针,配置25 µL反应体系(含6 mM MgCl₂、引物各700 nM、探针175 nM、模板DNA2 µL)后在荧光定量PCR仪上扩增。反应程序为:95℃预变性10分钟;随后40个循环(95℃变性15秒,60℃退火延伸1分钟,此阶段采集荧光信号)。该方法特异性强,与埃立克体、立克次体、大肠杆菌等无交叉反应;灵敏度高,最低可检出50个螺旋体,适用于蜱类、血液等样本中伯氏疏螺旋体的快速筛查与流行病学监测,该方法所用靶标及引物(探针)序列见表1。
表1 伯氏疏螺旋体qPCR引物序列[10]
| 引物名称 | 序列 |
| F | 5′-CGAGTCTTAAAAGGGCGATTTAGT-3′ |
| R | 5′-GCTTCAGCCTGGCCATAAATAG-3′ |
| TaqMan探针 | FAM-AGATGTGGTAGACCCGAAGCCGAGTG-TAMRA |
1.4典型案例
在一项针对新疆阿拉山口艾比湖湿地蜱种莱姆病病原体的研究中,王安东等于2014年4–8月在新疆阿拉山口艾比湖湿地区域选取3个采集点,采用布旗法采集游离蜱;经形态学鉴定后,运用巢式PCR扩增莱姆病病原5S-23S rRNA基因,并对PCR产物进行测序及BLAST比对分析。共检测游离蜱152只,其中血红扇头蜱12只、亚洲璃眼蜱59只、边缘革蜱81只。各蜱种莱姆病病原总体阳性率为34.87%(53/152),其中亚洲璃眼蜱阳性率高达57.63%(34/59),边缘革蜱阳性率为22.22%(18/81),血红扇头蜱阳性率为8.33%(1/12),亚洲璃眼蜱阳性率显著高于其他两种蜱。通过5S-23S rRNA基因测序比对,确定该湿地莱姆病基因型为伯氏疏螺旋体(Borrelia burgdorferi)。该研究首次在新疆阿拉山口艾比湖湿地硬蜱中检测到伯氏疏螺旋体,提示该地区为莱姆病病原自然疫源地[11]。
1.5防治对策
伯氏疏螺旋体的防治是一项系统工程,需要综合考虑生态、医学和社会等多方面因素。
从环境治理角度,破坏蜱虫的生存环境能有效减少其种群数量。有研究指出,定期对蜱虫密集的林区、草地进行清理,如割除杂草、清扫落叶,可以显著降低蜱虫的栖息空间。在蜱虫高发区域,合理使用杀虫剂如氯菊酯,能有效杀灭蜱虫,但使用时要充分评估对环境的潜在影响。对野生啮齿动物等蜱虫宿主进行科学的种群调控,也有助于减少蜱虫的感染源,不过这需要谨慎权衡对生态平衡的影响。
个人防护在预防感染中起着关键作用。当人们进入可能存在蜱虫的区域时,应穿着长袖长裤,并将裤腿扎进袜子,选择浅色衣物以便及时察觉附着的蜱虫。在衣物及暴露皮肤表面涂抹含避蚊胺(DEET)的驱虫剂,防护效果可持续数小时。户外活动结束后,要全面检查身体各部位,尤其是腰部、腋窝、腹股沟及脚踝下方等蜱虫易附着的部位。若发现蜱虫,需用细口镊子尽可能贴近皮肤表面垂直拔除,防止蜱虫口器残留体内。
医学干预是伯氏疏螺旋体防治的重要环节。对于已感染的患者,抗生素治疗是核心手段。在疾病早期,口服多西环素、阿莫西林等抗生素,疗程通常为2-3周,可有效杀灭细菌。若感染进展至晚期,出现神经系统、心血管系统等严重并发症,可能需要静脉注射头孢曲松等抗生素,疗程延长至3-4周。
参考文献
[1] DENNIS L.KASPER, ANTHONY S. FAUCI等. 哈里森感染病学. 上海:上海科学技术出版社, 2019.
[2] 何萍, 尹家祥. 伯氏疏螺旋体的特征及其啮齿动物感染情况. 中国人兽共患病学报, 2024, 40: 214-218.
[3] Tatum R, Pearson-Shaver AL. Borrelia Burgdorferi. StatPearls. Treasure Island (FL): StatPearls Publishing, 2023.
[4] Miklossy J, Kasas S, Zurn AD. Persisting atypical and cystic forms of Borrelia burgdorferi and local inflammation in Lyme neuroborreliosis. Journal of Neuroinflammation, 2008, 5: 40.
[5] Corona, A., Schwartz. Borrelia burgdorferi: Carbon metabolism and the tick-mammal enzootic cycle(Article). Microbiology Spectrum, 2015, 3.
[6] Claire M. Fraser, Sherwood Casjens, Wai Mun Huang et al. Genomic sequence of a Lyme disease spirochaete, Borrelia burgdorferi. Nature,1997, 390: 580.
[7] Eugene Braunwald, 陶立坚. 哈里森内科学手册 第15版. 长沙: 湖南科学技术出版社, 2006.
[8] 魏伟. 莱姆病的临床特点及处置要点. 中国工业医学杂志, 2022, 35: 340-342.
[9] 郝琴, 王磊, 田秀君. 莱姆病防治专家共识. 中国人兽共患病学报, 2022, 38: 749-756.
[10] Courtney JW, Kostelnik LM, Zeidner NS, Massung RF. Multiplex real-time PCR for detection of anaplasma phagocytophilum and Borrelia burgdorferi. Journal of Clinical Microbiology, 2004, 42: 3164-3168.
[11] 王安东, 徐军, 王远志 等. 新疆阿拉山口艾比湖湿地蜱种莱姆病病原体检测. 中华地方病学杂志, 2015, 34: 592-595.