
迟缓爱德华氏菌(Edwardsiella tarda)
物种名:迟缓爱德华氏菌
拉丁学名:Edwardsiella tarda
分类学地位:细菌界Bacteria;假单胞菌门Pseudomonadota;
γ-变形菌纲Gammaproteobacteria;肠杆菌目Enterobacterales;
哈夫尼亚科Hafniaceae;爱德华氏菌属Edwardsiella
迟缓爱德华氏菌(Edwardsiella tarda)最早于1962年从日本养殖鳗鲡(Anguilla japonica)中分离得到。该菌是一种革兰氏阴性、可移动、兼性厌氧的杆状菌,无荚膜,利用周生鞭毛运动,不形成芽孢,可在pH 4.0-10.0和温度14-45℃范围内存活。该菌主要感染鱼类并引起爱德华氏菌病,是重要的水产养殖病原之一;同时也可感染多种脊椎动物,并可作为机会致病菌引起人类胃肠炎、伤口感染及败血症等疾病。
1.1生物学特性
1.1.1培养特征
迟缓爱德华氏菌在普通琼脂平板上生长,菌落呈圆形、边缘整齐、灰白色、湿润,直径约0.5-1.0 mm;在血液琼脂平板上生长良好,菌落周围形成狭窄的β-溶血环;在营养马丁肉汤中于30℃培养24h后生长良好,呈均匀混浊。此外,该菌革兰氏染色阴性,为杆菌,无荚膜、无芽孢,有运动力[1]。
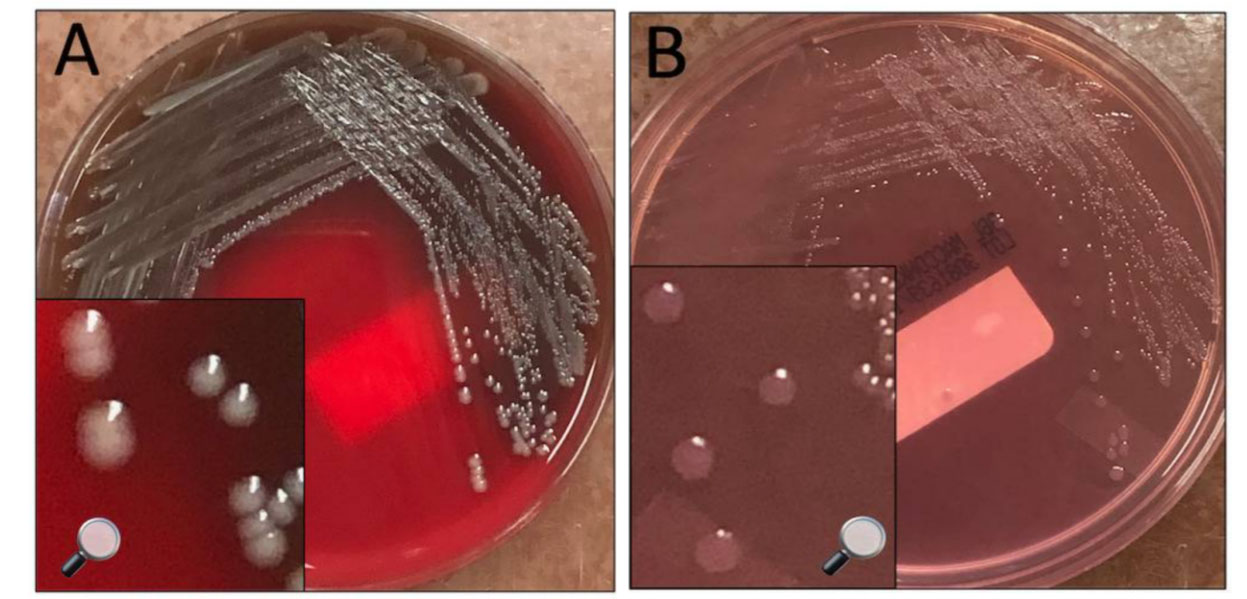
A:羊血琼脂,B:麦康基琼脂[2]
1.1.2形态学特征
迟缓爱德华氏菌该分离菌为革兰氏阴性杆菌,菌体两端钝圆或平直,多数散在排列,少数成对排列,无荚膜、无芽孢,大小多在(0.5–0.9) μm×(1.1–2.0) μm,具周生鞭毛,运动活泼[3]。
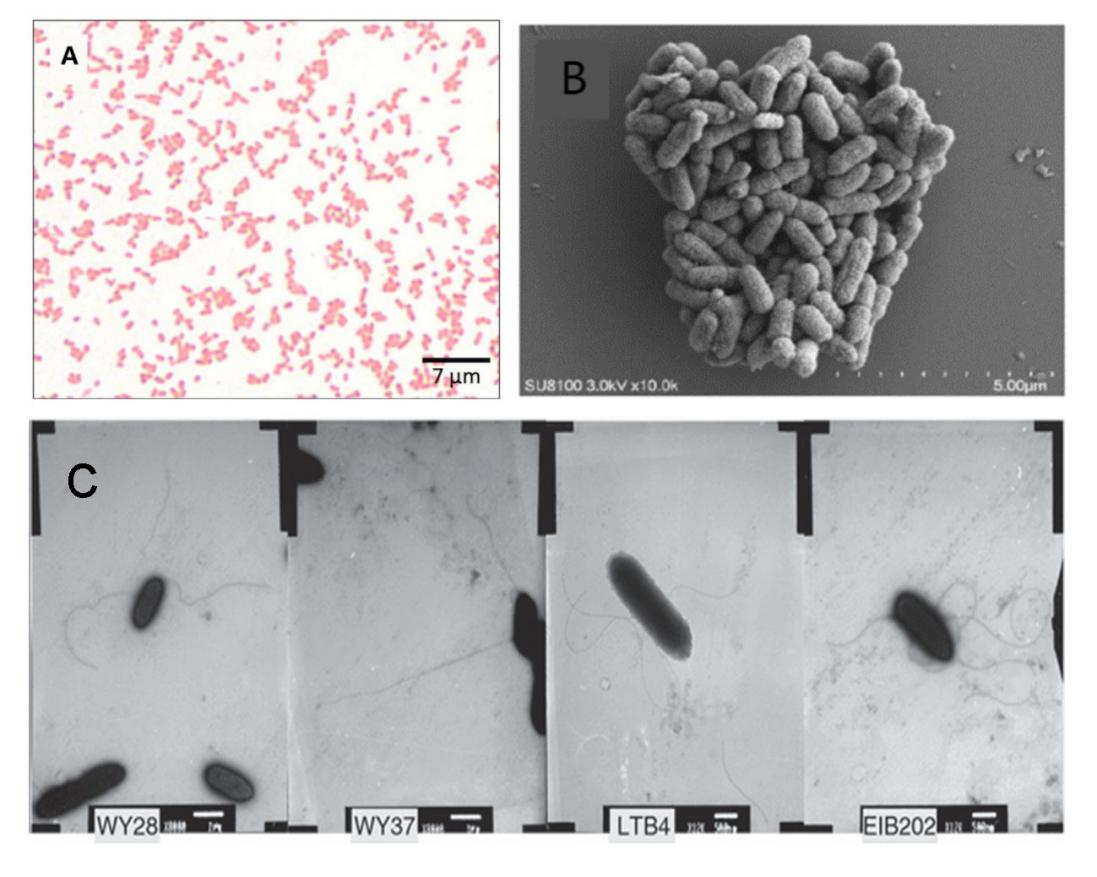
A:迟缓爱德华氏菌革兰氏染色照片[2],B:迟缓爱德华氏菌在扫描电镜下照片[4]
C:迟缓爱德华氏菌在透射电镜下照片[5]
1.1.3生化特征
迟缓爱德华氏菌能利用鸟氨酸、赖氨酸、果糖、半乳糖等;不能利用精氨酸、阿拉伯糖、纤维素二塘、鼠李糖等;对过氧化氢酶、吲哚反应呈阳性;对氧化酶、脲酶呈阴性,能产生H2S气体和利用葡萄糖产气,对硝酸盐有还原作用[4]。
1.2分布、传播与致病性
1.2.1分布与传播
迟缓爱德华氏菌普遍存在于淡水、海水环境中。地域分布十分广泛,主要分布于澳大利亚、印度、马来群岛、以色列、日本、巴拿马、美国等热带和亚热带地区国家。宿主范围也十分广泛,在鱼、龟、鳄鱼、海鸥、蟾蜍、蛇、蜥蜴和鹈鹕等动物中都有分离到该细菌的报道[6]。
1.2.2致病性
迟缓爱德华氏菌的致病过程涉及黏附、侵袭、抗宿主免疫和毒素分泌等多个环节。其致病因子包括血凝素、软骨素酶、过氧化氢酶、溶血素和皮下坏死毒素等,分别参与细菌的黏附定殖、组织破坏、抵抗巨噬细胞杀伤及宿主细胞损伤。近年来发现的Ⅲ型分泌系统(TTSS)仅存在于致病菌株中,是其最重要的毒力因子之一,通过向宿主细胞输送效应蛋白介导细菌的侵袭和毒力发挥[6]。
1.3检测方法
(1)传统方法:分离培养、形态特征检查、生理生化特性检查。将迟缓爱德华氏菌接种于TSA斜面,培养8-12 h后,用缓冲液将菌体从培养基上洗脱。然后,取菌液滴在经Formvar膜包被的铜网上,静置1 min左右后吸除菌液,再用2%磷钨酸水溶液负染5 min左右。待自然干燥后,在透射电子显微镜下检查。此外,迟缓爱德华氏菌的鞭毛数量也可以通过光学显微镜放大1000倍观察并统计等[7]。
(2)分子检测方法:Reichley等人[8]针对表型难以区分的迟缓爱德华氏菌(具体引物见表1)、E. piscicida 及E. piscicida-like 菌种,分别基于已发表的菌毛基因簇引物,设计并验证了三套特异性实时荧光定量PCR(qPCR)检测体系。各体系对目标菌种均表现出高度特异性,与非目标菌无交叉反应。检测性能方面,各体系的线性动态范围均覆盖8个数量级,检测限达5个拷贝/反应,且在肾脏组织、池塘水样等基质中的定量下限为102-103 CFU/样本,表明该方法具有高灵敏度、良好的重复性与重现性,可为疾病的快速鉴别诊断提供可靠工具。
表1 迟缓爱德华氏菌PCR检测的引物序列[8]
| 引物 | 序列(5´→3´) |
| ET3518F | CAGTGATAAAAAGGGGTGGA |
| ET3632R | CTACACAGCAACGACAACG |
| ET3559P | AGACAACAGAGGACGGATGTGGC |
1.4典型案例
迟缓爱德华氏菌与水环境关系密切,是重要的水生动物病原之一。巴西圣保罗州曾报道一起发生于天然池塘的迟缓爱德华氏菌暴发事件,受影响对象不仅包括罗非鱼,还包括野鸭和白鹭等水禽。病原学检测从多种动物多个器官中分离出迟缓爱德华氏菌,并经MALDI-TOF和分子方法确认,提示该菌可在受污染水环境中跨物种传播,造成池塘生态系统内多种动物死亡[9]。
此外,养殖系统中的迟缓爱德华氏菌感染也与水环境条件密切相关。研究显示,在尼罗罗非鱼和条纹鲶养殖场中,迟缓爱德华氏菌可从病鱼及养殖水样中同时检出,患鱼常出现体表病变、败血症及死亡,且发病与高水温、有机负荷增加及水质恶化有关[10]。这些案例表明,迟缓爱德华氏菌不仅是水产养殖中的重要病原,也可借助受污染水体在养殖环境中持续传播,进而造成显著的生态和经济损失。
1.5防治对策
(1)化学治疗法:庆大霉素、氨芒青霉素、新霉素、土霉素、氯霉素、四环素、链霉素及磺胺类药物;
(2)生物防治:Patil等[11]从海洋底质分离到了有抗迟钝爱德华氏菌作用的链霉菌。
参考文献
[1] 邓显文, 谢芝勋, 刘加波, 等. 罗非鱼迟缓爱德华氏菌的分离与鉴定. 水生态学杂志, 2009, 2: 114-117.
[2] Lucia An, June LC, Margaret N et al. Case Report: Disseminated Edwardsiella tarda infection in an immunocompromised patient. Frontiers in Cellular and Infection Microbiology, 2023, 13: 1292768.
[3] 贺宝玲, 何振平, 王秀云 等. 漠斑牙鲆迟缓爱德华氏菌的分离与鉴定[J]. 河北科技师范学院学报, 2008, 22(4): 15-18.
[4] 李川北. 东北林蛙源迟缓爱德华氏菌分离、鉴定及其灭活疫苗的制备. 长江大学, 2023.
[5] He Y, Xu T, Han Y et al. Phenotypic diversity of Edwardsiella tarda isolated from different origins. Letters in Applied Microbiology, 2011, 53: 294-299.
[6] 王波, 莫照兰. 迟缓爱德华氏菌及其致病机理. 海洋科学集刊, 2007, 48: 133-139.
[7] He Y, Xu T, Han Y et al. Phenotypic diversity of Edwardsiella tarda isolated from different origins. Letters in Applied Microbiology, 2011, 53: 294-299.
[8] Reichley SR, Ware C, Greenway TE et al. Real-time polymerase chain reaction assays for the detection and quantification of Edwardsiella tarda, Edwardsiella piscicida, and Edwardsiella piscicida-like species in catfish tissues and pond water. Journal of Veterinary Diagnostic Investigation, 2015, 27: 130-139.
[9] Bueno RV, de Souza AJ, de Menezes GC et al. Edwardsiella tarda outbreak affecting fishes and aquatic birds in Brazil. Journal of Fish Diseases, 2019, 42: 113-121.
[10] Okasha LA, Farag EAH, Sayed-ElAhl RM et al. Presence of virulent Edwardsiella tarda in farmed Nile tilapia and striped catfish. BMC Microbiology, 2025, 25: 572.
[11] Patil R, Eyasekaran Gj, Shanmugam SA. Control of bacterial pathogens, associated with fish diseases, by antagonistic marine actinomycetes isolated from marine sediments. Indian Journal of Geo-Marine Sciences, 2001, 30: 264-267.