
阿氏肠杆菌(Enterobacter asburiae)
物种名:阿氏肠杆菌
拉丁学名:Enterobacter asburiae
分类学地位:细菌界Bacteria;假单胞菌门Pseudomonadota;
γ-变形菌纲Gammaproteobacteria;肠杆菌目Enterobacterales;
肠杆菌科Enterobacteriaceae;肠杆菌属Enterobacter;
阿氏肠杆菌是革兰氏阴性细菌。这种细菌在自然环境中广泛存在,尤其是在水体和土壤中。阿氏肠杆菌在水产养殖中是一种重要的病原体,能够引起鱼类的多种疾病,如败血症、皮肤溃疡和出血性疾病,对养殖业造成经济损失。它还能通过食物链传播给人类,可能引起食源性疾病。1986年,Brenner等人在研究临床来源的新型肠杆菌群时,首次将此前归类为Enteric Group 17的细菌正式描述和命名为阿氏肠杆菌。这一新种由71株菌组成,其中70株分离自人类。该发现填补了肠杆菌科中此类细菌的分类空白,并促成了对其生物学特性及在自然界作用的后续研究[1]。
1.1生物学特性
1.1.1培养特征
阿氏肠杆菌可以在多种实验室培养基[2]上生长,阿氏肠杆菌在麦康凯琼脂培养基上形成粉红色菌落(图1);在血琼脂培养基上通常形成无溶血现象的灰白色菌落;在伊红美蓝琼脂上形成深紫色到黑色的菌落,有时伴有金属光泽。
阿氏肠杆菌能在广泛的温度范围条件下生长良好,最适生长温度为25°C至37°C。这种温度范围涵盖了许多自然环境和人体环境的温度,使得该菌能够在不同的宿主和环境中存活。作为一种兼性厌氧菌,阿氏肠杆菌能够在有氧和无氧条件下生长,这进一步增强了其在多种环境中的生存能力。
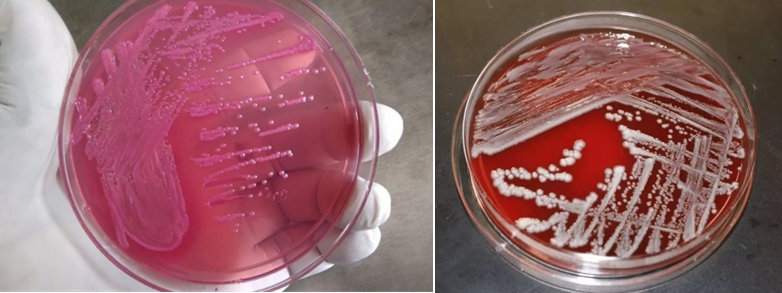
图1 阿氏肠杆菌在麦康凯琼脂培养基上的菌落形态[2]
1.1.2形态学特征
阿氏肠杆菌在显微镜下呈现为短杆状细菌,革兰氏染色呈阴性,通常长度为1-2 μm,直径约为0.5 μm。其细胞周围分布有鞭毛,这赋予了它在液体环境中的运动能力,帮助它在宿主组织中扩散和定植。阿氏肠杆菌不形成孢子,这意味着它在不利条件下的生存能力可能依赖于其他适应机制,如形成生物膜或进入静息状态[3]。阿氏肠杆菌在光学显微镜和扫描电镜下形态特征见图2A和图2B。
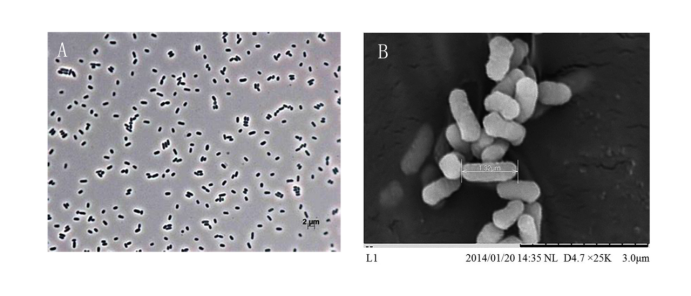
图2 阿氏肠杆菌的形态学特征
A:阿氏肠杆菌在光学显微镜下的照片[4],B:阿氏肠杆菌在扫描电镜下的照片[5]
1.1.3生化特征
阿氏肠杆菌作为肠杆菌科成员,展示了特定的生化反应特征。其菌株在柠檬酸盐利用试验中呈阳性,并能从乳糖产酸,同时从D-葡萄糖产酸产气,并可发酵L-阿拉伯糖、纤维二糖、D-甘露醇、蔗糖、海藻糖、D-木糖等多种糖类。这些生化反应特征有助于该菌适应不同的环境条件并在相应生态位中生存繁殖[1]。
1.1.4分子生物学特征
在分子生物学水平上,阿氏肠杆菌的基因组已经被广泛研究,其基因组大小约为4.5-5.5 Mb,包含大约4000至5000个编码基因。以下是阿氏肠杆菌的分子生物学特征的详细描述[5]:
16S rRNA基因序列分析:阿氏肠杆菌的16S rRNA基因序列分析是其分类和鉴定的关键工具。16S rRNA基因是一种高度保守的基因,其序列可以用于确定细菌的分类地位和进化关系。阿氏肠杆菌的16S rRNA基因与肠杆菌属的其他成员(如Enterobacter cloacae)有较高的相似性,但也具有足够的差异性,能够将其从其他近缘菌株中区分开来。
基因组结构:阿氏肠杆菌的基因组主要由一个环状染色体组成,此外还可能携带一个或多个质粒。质粒常携带与抗生素耐药性或毒力相关的基因,这使得阿氏肠杆菌在医院环境中的传播和感染更加复杂。
耐药性基因[6]:阿氏肠杆菌在其基因组中常携带多种耐药性基因,特别是编码β-内酰胺酶(如CTX-M、TEM、SHV型)的基因。这些酶能够水解广谱β-内酰胺类抗生素,使得阿氏肠杆菌对这些抗生素表现出耐药性。此外,氨基糖苷修饰酶(如AAC、ANT)和多种外排泵系统(如AcrAB-TolC)的基因也普遍存在于阿氏肠杆菌中,这些基因通过不同机制增强了该菌对多种抗生素的耐受能力。
毒力因子基因:阿氏肠杆菌还携带一些与毒力相关的基因,如编码鞭毛蛋白、脂多糖(LPS)和外膜蛋白的基因。这些毒力因子在阿氏肠杆菌的致病性中起着重要作用。例如,LPS是革兰氏阴性菌的外膜成分,能够诱导宿主的强烈免疫反应,导致炎症反应和组织损伤。
生物膜形成能力:阿氏肠杆菌具备形成生物膜的能力,这在医院环境中特别具有重要意义。生物膜由细菌群体及其分泌的黏附物质组成,能够附着在医疗器械、导管及宿主组织上。生物膜形成使得细菌对抗生素和宿主免疫系统的抵抗能力显著增强,从而增加了感染的持续性和治疗的难度。
1.2分布、传播与致病性
1.2.1分布与传播
阿氏肠杆菌属于肠杆菌属,该属成员为环境来源生物,并已被报道为植物、动物和人类的兼性(机会性)病原菌。该属细菌常见于水、污水、土壤、植物或动物粪便等环境介质中。具体到E. asburiae,它已被从水、土壤、植物、食品、医院环境以及医护人员的设备(如探头、导尿管等)中分离获得,这体现了其广泛的分布范围[7]。
1.2.2致病性
阿氏肠杆菌属于机会性致病菌,主要感染免疫功能低下、有基础疾病或接受侵入性治疗的患者。最常见的感染类型包括呼吸机相关性肺炎、导管相关性尿路感染和菌血症。由耐药阿氏肠杆菌引起的菌血症病情尤为凶险,死亡率可高达20-40%[6, 7]。
美国CDC和NIH将阿氏肠杆菌列为生物安全二级(BSL-2)病原体。尽管饮用水和地表水标准未对阿氏肠杆菌单独设限,但其作为肠杆菌科的一员,其存在与粪便污染指标密切相关。中国《生活饮用水卫生标准》(GB5749-2022):要求总大肠菌群、耐热大肠菌群和大肠埃希氏菌均不得检出(/100 mL)。中国《地表水环境质量标准》(GB3838-2002):对集中式生活饮用水地表水源地的粪大肠菌群限值要求为:I、II类水域≤2000 CFU/L,III类水域≤10000 CFU/L。
1.3检测方法
(1)传统方法:该方法是临床微生物实验室鉴定阿氏肠杆菌的基础。操作原理:将样品(如痰、血液、尿液、水样)接种于选择性/鉴别性培养基(如麦康凯琼脂),利用其发酵乳糖产酸的特性进行初步筛选。挑取可疑的粉红色单菌落,进行纯培养后,采用标准化的生化鉴定系统(如API 20E生化条或VITEK2全自动微生物鉴定系统)进行菌种鉴定。该流程遵循国际通行的临床微生物学操作规范,其原理和步骤可参考中国国家标准GB4789系列中对肠杆菌科细菌的检验方法。
(2)分子检测方法:Nguyen Van Chuong等人建立基于16S rRNA基因PCR扩增测序的阿氏肠杆菌鉴定体系。其对土壤/根际分离的菌株先用Promega Genome Isolation Kit提取基因组DNA,随后以引物对PA和PH(详细序列见表1)在M.J. Research PTC-100热循环仪上经多轮PCR扩增16S rRNA基因。PCR产物经Sanger测序后,将序列用NCBI BLAST与公共数据库比对,所选分离株分支与E. asburiae的相似度高达99.74%,从而在种水平完成确证,适用于土壤/环境源E. asburiae菌株的快速分子鉴定[8]。
表1 阿氏肠杆菌16S rRNA基因测序常用引物序列[8]
| 名称 | 序列 |
| PA | 5′-AAGAGTTTGATCCTGGCTCAG-3′ |
| PH | 5′-AAGGAGGTGATCCAGCCGCA-3′ |
1.4典型案例
一名22岁男性因全地形车事故导致腿部软组织损伤,其感染物为阿氏肠杆菌和嗜水气单胞菌。这两种微生物均已在事发地土壤和水中被分离出来,目前认为暴露于水环境是导致软组织感染的可能途径[9]。
1.5防治对策
1.强化医院感染控制:核心措施是“切断传播途径”。严格执行医护人员的手卫生规范;对呼吸机、导管等高风险医疗器械进行规范的清洁和消毒;加强对病区水槽、水龙头等潮湿环境的日常清洁与消毒,防止生物被膜形成;对耐药菌感染者实施接触隔离。
2.实施抗生素管理策略:由于阿氏肠杆菌极易产生耐药性,必须推行抗生素科学管理。依据药敏试验结果选择最窄谱、有效的抗生素,避免经验性滥用广谱药物。这有助于减缓耐药性的发展,并保留高级别抗生素作为最后防线。
参考文献
[1] D J Brenner, A C McWhorter, A Kai et al. Enterobacter asburiae sp. nov., a new species found in clinical specimens, and reassignment of Erwinia dissolvens and Erwinia nimipressuralis to the genus Enterobacter as Enterobacter dissolvens comb. nov. and Enterobacter nimipressuralis comb. nov. Journal of Clinical Microbiology, 1986, Vol.23: 1114-1120.
[2] Mardaneh J, Soltan Dallal MM. Isolation and identification Enterobacter asburiae from consumed powdered infant formula milk (PIF) in the neonatal intensive care unit (NICU). Acta Medica Iranica, 2016, 54: 39-43.
[3] Lau YY, Yin WF, Chan KG. Enterobacter asburiae strain L1: complete genome and whole genome optical mapping analysis of a quorum sensing bacterium. Sensors (Basel), 2014, 14: 13913-13924.
[4] Kämpfer P, McInroy JA, Glaeser SP. Enterobacter muelleri sp. nov., isolated from the rhizosphere of Zea mays. International Journal of Systematic and Evolutionary Microbiology, 2015, 65: 4093-4099.
[5] Zhu B, Wang S, Li O et al. High-quality genome sequence of human pathogen Enterobacter asburiae type strain 1497-78T. Journal of Global Antimicrobial Resistance, 2017, 8: 104-105.
[6] Davin-Regli A, Lavigne JP, Pagès JM. Enterobacter spp.: update on taxonomy, clinical aspects, and emerging antimicrobial resistance. Clinical Microbiology Reviews, 2019, 32: e00002-19.
[7] Anne Davin-Regli, Jean-Philippe Lavigne, Jean-Marie Pagès. Enterobacter spp.: Update on Taxonomy, Clinical Aspects, and Emerging Antimicrobial Resistance. Clinical microbiology reviews, 2019, Vol.32: e00002-19.
[8] Van Chuong, NguyenCAa. Efficiency of Enterobacter asburiae and Vermicompost on the Peanut Growth and Yield. Journal of Global Innovations in Agricultural Sciences, 2024, Vol.12: 563-574.
[9] Koth K, Boniface J, Chance EA et al. Enterobacter asburiae and Aeromonas hydrophila: soft tissue infection requiring debridement. Orthopedics. 2012, 35: e996-9.