
西尼罗河病毒(West Nile virus)
物种名:西尼罗河病毒
拉丁学名:West Nile virus
分类学地位:正核糖病毒界Orthornavirae;小RNA病毒门Kitrinoviricota;
黄病毒纲Non-enveloped viruses;黄病毒目Amarillovirales;
黄病毒科Flaviviridae;正黄病毒属Orthoflavivirus
西尼罗河病毒最早于1937年由Smithburn等人在乌干达西尼罗地区,从一名发热女性血液标本中分离获得,并依发现地命名。早期研究仅认为该病毒在非洲局部流行、致病程度较轻;后续血清学证实其归属于日本脑炎病毒血清复合群。1999年毒株传入北美并引发大规模疫情,人们逐渐意识到其具有跨洲扩散能力。病毒自然循环存在于库蚊与野生鸟类之间,人、马属于终末宿主,可引发西尼罗热,严重病例出现脑炎、脑膜炎,属于重要蚊媒人畜共患病RNA病毒。
1.1生物学特性
1.1.1培养特征
西尼罗病毒嵌合体的体外培养特征受E蛋白 EIII结构域序列调控,病毒的复制动力学、颗粒稳定性与噬斑表型均可发生改变;WNV/JEV‑EIII在Vero和C6/36细胞复制动力学与亲本WNV NY99接近,WNV/BAGV‑EIII不仅复制效率下降,37 ℃颗粒稳定性显著降低,还表现出温度敏感表型。此外,不同病毒株或嵌合体在同一Vero细胞上形成的空斑大小也存在差异,例如WNV NY99株在感染72小时后可形成直径约3.60 ± 0.52 mm的清晰大空斑,WNV/KOUV‑EIII、WNV/BAGV‑EIII空斑显著缩小,而WNV/JEV‑EIII、WNV/SLEV‑EIII 仍维持大空斑表型[1]。
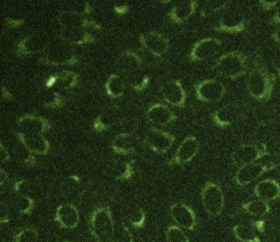
图1 野生型西尼罗河病毒感染细胞[2]
1.1.2形态学特征
西尼罗河病毒为有包膜单股正链RNA虫媒病毒。成熟病毒颗粒在电镜下呈球形,完整病毒粒子直径45-50 nm;内部核衣壳为二十面体对称结构,直径约30 nm,由衣壳蛋白(C蛋白)包裹病毒基因组RNA组装形成。核衣壳外侧包裹来源于宿主细胞膜的脂质双层包膜,包膜中镶嵌包膜糖蛋白(E蛋白)与膜蛋白(M蛋白)。成熟WNV病毒颗粒表面光滑,无明显突起纤突;180拷贝E蛋白与180拷贝M蛋白组装成90组反向平行E同源二聚体,规律排布于包膜外侧,形成高度有序的二十面体外壳[3]。负染透射电镜(TEM)可观察到纯化球形病毒颗粒;超薄切片电镜可在感染细胞内质网衍生囊泡内观察到聚集的电子致密病毒粒子。冷冻电镜三维重构解析显示病毒颗粒具备动态构象特征,存在“呼吸效应”,参与病毒受体识别与膜融合过程[4]。
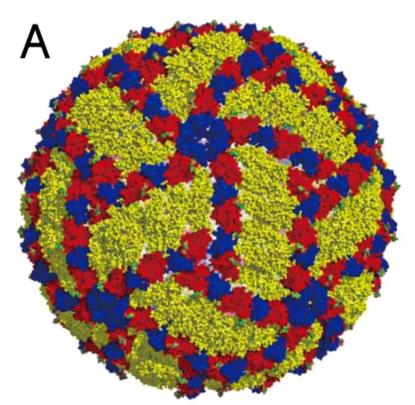
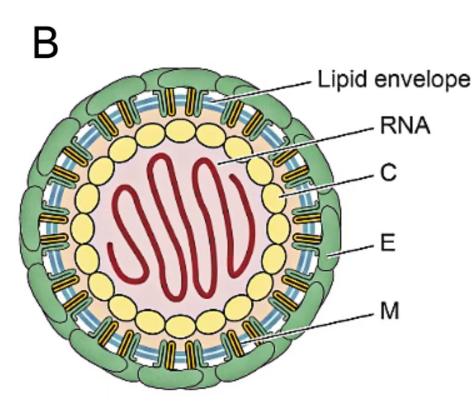
图2 西尼罗河病毒颗粒结构图
A:西尼罗河病毒颗粒结构示意图[3],B:成熟西尼罗河病毒颗粒结构模式图[4]
1.1.3生化特征
西尼罗病毒(WNV)的生化特征与其基因组编码的蛋白功能密切相关。病毒的核心生化活动包括:其NS5蛋白具有甲基转移酶(负责RNA加帽)和RNA依赖的RNA聚合酶(负责基因组复制)活性;NS3蛋白则是一个多功能酶,其N端与NS2B形成丝氨酸蛋白酶复合物,C端具有解旋酶、核苷三磷酸酶和RNA三磷酸酶活性,对病毒复制至关重要;此外,非结构蛋白NS1、NS2A、NS4A和NS4B等还参与调节宿主免疫反应、抑制干扰素信号通路等,共同构成了病毒复制的生化基础[5]。
1.1.4分子生物学特征
西尼罗河病毒基因组为长度约11kb的单股正链RNA(+ssRNA),5’端携带Ⅰ型m⁷GpppAmp帽结构,3’端无poly(A)尾,代之以保守茎环RNA二级结构。基因组两端存在高度结构化非翻译区(UTR),5’UTR包含SLA启动子茎环结构,5’与3’UTR互补序列介导基因组远距离环化;该环化构象是启动负链 RNA 合成的必需分子基础,线性RNA模板主要承担翻译功能。基因组仅拥有单一开放阅读框(ORF),翻译产生一条多聚蛋白前体,依靠宿主内质网信号肽酶与病毒NS2B-NS3丝氨酸蛋白酶复合体完成共翻译与翻译后切割,产生3种结构蛋白(C、prM/M、E)与7种非结构蛋白(NS1、NS2A、NS2B、NS3、NS4A、NS4B、NS5)[6]。
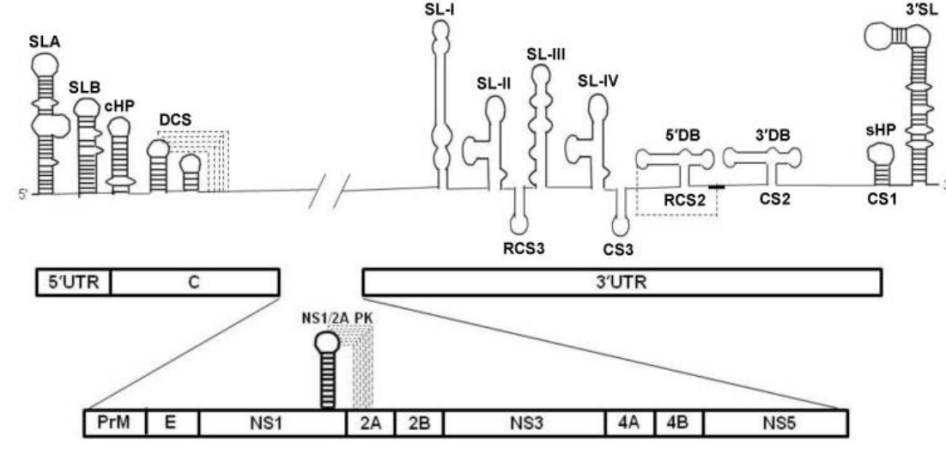
图3 西尼罗河病毒RNA二级结构图[6]
1.2分布、传播与致病性
1.2.1分布与传播
西尼罗河病毒1937年首次分离于乌干达,现已形成跨大洲广泛分布格局,除南极洲外,非洲、欧亚大陆、北美洲均存在地方流行或季节性暴发,亚洲中东、西亚、印度存在零散流行株,我国境内仅检出血清学阳性证据,无本地人间大规模暴发记录[7]。
西尼罗河病毒自然循环以库蚊-鸟类为核心兽传循环,各类Culex蚊虫为全球主要媒介:北美乡村优势媒介为跗斑库蚊、城市为致倦库蚊,欧洲以尖音库蚊为主;白纹伊蚊等伊蚊属蚊虫仅作为次要桥梁媒介,多在城郊环境完成鸟类向人类的溢出传播。人类、马、犬等哺乳动物属于终末宿主,体内病毒血症水平极低,无法反向感染蚊虫,不参与自然循环[8]。传播途径主要是蚊虫叮咬,蚊虫吸食带毒鸟类血液后再次吸血时病毒经唾液注入人体,此外还有输血、器官移植、母婴垂直传播、动物间接触传播等等方式。
1.2.2致病性
西尼罗河病毒具有强嗜神经性,其致病过程分为外周感染、病毒血症扩散、中枢神经系统侵袭三个递进阶段,致病能力由病毒分子毒力位点与宿主免疫水平共同决定。蚊虫叮咬后,病毒首先在皮肤角质形成细胞、朗格汉斯树突状细胞内完成初次复制,感染树突细胞携带病毒迁移至引流淋巴结大量扩增,诱发短期病毒血症,病毒随血液循环播散至脾脏、肝脏等外周脏器;健康人群中约80%感染者无明显临床症状,仅20%出现西尼罗河热,表现为持续发热、肌痛、关节痛、躯干一过性斑丘疹与消化道不适,病程多自限性。仅不足1%的免疫功能正常人群、高龄或免疫抑制个体会发生神经侵袭性感染,也是本病重症与死亡的核心诱因[8]。
1.3检测方法
(1)传统方法:病毒直接检测即传统病毒分离,将病毒接种Vero、BHK-21细胞,培养7天观察细胞病变效应[9]。
(2)分子生物学方法:李林海等人[10]的研究建立了一套西尼罗河病毒的快速检测方法,该研究针对WNV囊膜蛋白(E)基因的保守序列设计了一对特异性引物(表1),建立了SYBR Green实时荧光定量PCR检测方法。该方法扩增产物大小为100 bp。特异性试验显示,该方法与日本脑炎病毒(JEV)、圣路易斯脑炎病毒(SLEV)等均无交叉反应,特异性良好。灵敏度试验表明,最低可检出100 pg的cDNA。标准曲线斜率为-3.444,相关系数为0.995,PCR扩增效率为100%。重复性试验显示,Ct值变异系数(CV)在0.11%-0.66%之间,重复性良好。对54例WNV感染血清样本进行检测,阳性检出率达98.15%,表明该方法可用于WNV的临床快速诊断。
表1 西尼罗河病毒荧光RT-qPCR引物及探针[10]
| 名称 | 序列(5′→3′) |
| WNV F | TCACGGCACTGTGGTGTTGG |
| WNV R | CCCACTGGCGTTAGGTCGTT |
1.4典型案例
2021年2月至2023年10月,美国加利福尼亚州萨克拉门托县、伍德兰市及内布拉斯加州林肯市的5座污水处理厂对进水废水(含初沉污泥或原污水)进行西尼罗河病毒RNA检测,采用液滴数字反转录PCR(ddRT-PCR)靶向多聚蛋白基因;结果显示601份样本中共9份(1.5%)检出WNV RNA,浓度范围为1755-11404 copies/g干重,阳性率在萨克拉门托、伍德兰和林肯三地分别为3.3%、5.9%和13%,而旧金山湾区的圣何塞和欧申赛德两厂均为阴性;检测阳性与社区临床病例的季节性流行相吻合,但与周度病例数无显著相关性(p>0.05),汇总分析显示每周WNV RNA检出与发病率显著相关。建议废水监测可作为传统蚊虫监测的补充性哨点预警工具,尤其是缺乏广泛蚊虫和临床检测系统的地区[11]。
1.5防治对策
西尼罗河病毒暂无获批人用疫苗与特异性抗病毒药物,防控体系坚持同一健康理念,以媒介综合防控为核心,结合监测预警、个体防护、血液安全管控、动物免疫与临床对症干预形成综合防治方案[12]。通过环境整治清除库蚊孳生地实现源头减量;辅以生物防治、精准化学施药杀灭幼虫与成蚊。人群防护倡导减少晨昏库蚊活跃时段户外暴露,规范使用驱避剂、长袖衣物与纱窗屏障;血液及器官捐献开展核酸筛查,阻断输血传播途径。
参考文献
[1] McAuley AJ, Torres M, Plante JA et al. Recovery of West Nile Virus Envelope Protein Domain III Chimeras with Altered Antigenicity and Mouse Virulence. Journal of Virology. 2016, 90: 4757-4770.
[2] Orlinger KK, Holzer GW, Schwaiger J et al. An inactivated West Nile Virus vaccine derived from a chemically synthesized cDNA system. Vaccine, 2010, 28: 3318-3324.
[3] Miguel AM, Saiz JC . West Nile virus:A re-emerging pathogen revisited. World Journal of Virology, 2012,1: 51-70.
[4] Juan CS, Miguel AM, Ana BB et al. Pathogenicity and virulence of West Nile virus revisited eight decades after its first isolation. Virulence, 2021, 12: 1145-1173.
[5] Saiz JC, Martín-Acebes MA. The Pathogenicity and Virulence of West Nile Virus Revisited Eight Decades after Its First Isolation. Virulence. 2021, 12(1): 1145-1172.
[6] Brinton MA. Replication cycle and molecular biology of the West Nile virus. Viruses, 2013, 6: 13-53.
[7] Bruno L, Nappo MA, Frontoso R et al. West Nile Virus (WNV): One-Health and Eco-Health Global Risks. Vet Sci. 2025, 12: 288.
[8] Verena Z, Benedetta R , Stefano DB et al. West Nile virus: epidemiology, prevention, clinical features, diagnosis, treatment, and open research questions.Annals of Medicine, 2026, 58: 2615482.
[9] Sambri V, Capobianchi MR, Cavrini F et al.Diagnosis of west nile virus human infections: overview and proposal of diagnostic protocols considering the results of external quality assessment studies. Viruses, 2013, 5: 2329-2348.
[10] 李林海, 陈丽丹, 廖杨 等. 西尼罗河病毒实时荧光定量PCR检测方法的建立及其应用研究. 实用医学杂志, 2012, 28: 3288-3291.
[11] Zulli A, Duong D, Sheldon B et al. West Nile Virus (Orthoflavivirus nilense) RNA concentrations in wastewater solids at five wastewater treatment plants in the United States. PeerJ, 2025, 13: e19748..
[12] Najafi S, Jojani M, Najafi K et al. West Nile Virus: Epidemiology, Surveillance, and Prophylaxis with a Comparative Insight from Italy and Iran. Vaccines (Basel), 2026, 14: 57.