
巨细胞病毒(Cytomegalovirus)
物种名:巨细胞病毒
拉丁学名:Cytomegalovirus
分类学地位:香港病毒界Heunggongvirae;衣壳病毒门Peploviricota;
疱疹病毒纲Herviviricetes;疱疹病毒目Herpesvirales;
正疱疹病毒科Orthoherpesviridae;巨细胞病毒属Cytomegalovirus
巨细胞病毒(CMV)是一种广泛存在于自然界且具种属特异性的双股DNA病毒。人类感染的主要病原体为人巨细胞病毒(HCMV,又称人疱疹病毒5型)。该病毒最早于1881年被发现,因能使感染细胞显著增大并形成典型包涵体而得名。CMV主要在唾液腺中感染,可通过唾液、生殖道分泌物、胎盘、输血或器官移植等途径传播。多数人在幼儿期即发生初次感染,常为隐性或潜伏状态,但对新生儿、HIV感染者及器官移植患者等免疫缺陷人群可引起严重甚至致命的全身感染。临床上主要可引起发热、乏力、肝脾肿大、肺炎、视网膜炎、肝炎、脑炎及先天性感染所致的听力损伤和神经系统发育异常等症状。
1.1生物学特性
1.1.1培养特征
HCMV在体外培养中增殖缓慢,复制周期长,初次分离培养常需30-40天才出现明显的细胞病变效应。传统病毒分离培养通常需5-30天才能出具结果,费时费力。为缩短检测周期,现代实验室常用离心辅助的壳瓶培养法,将样本接种后离心促进病毒进入细胞,24-48小时内即可通过免疫荧光检测早期抗原快速判定阳性;同时,pp65抗原血症法和PCR等核酸检测已成为临床早期诊断的重要补充。需要注意的是,培养阳性结果仅能提示存在病毒排出,并不能单独作为活动性感染的判定依据,必须结合患者免疫状态和临床表现综合分析[1]。
1.1.2形态学特征
巨细胞病毒是一种包膜DNA病毒,电镜观察显示,有包膜的HCMV颗粒直径为170-185 nm,核衣壳直径约100 nm,核衣壳表面可见排列规则的壳微体。感染细胞后,可在细胞核内和胞浆内形成包涵体,这是组织学诊断CMV感染的重要依据[2]。
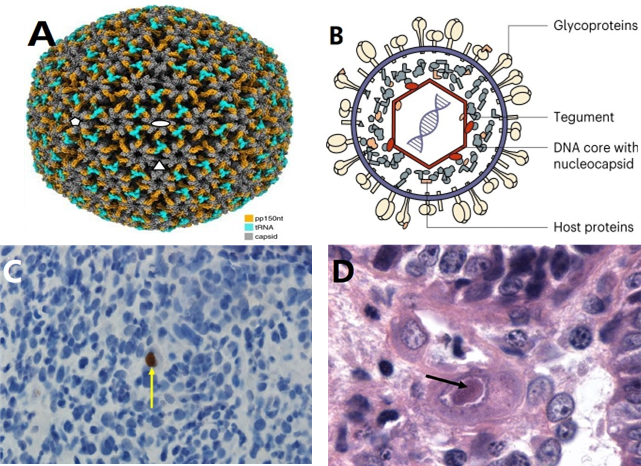
图1 巨细胞病毒结构特征[3]
A:HCMV病毒粒子的结构解析揭示了衣壳相关被膜蛋白pp150与宿主tRNA的结合[4];B:HCMV病毒粒子层的示意图C:CMV免疫染色,放大倍数×400,D:CMV结肠炎患者的活检标本显示了典型的“猫头鹰眼”核内包涵体(箭头)和胞浆内包涵体[5]
1.1.3生化特征
人巨细胞病毒在核衣壳与包膜之间的皮层区域含有多种蛋白,这些蛋白统称为皮层蛋白。皮层蛋白不仅占病毒颗粒蛋白的大部分,而且功能多样。该综述系统阐述了HCMV皮层蛋白在病毒入胞、基因表达、免疫逃避、组装和释放几个重要阶段中的功能。其中,pp65(pUL83)作为最主要的皮层蛋白,在病毒感染及诱导机体免疫反应中起重要作用;pp71(pUL82)作为病毒转激活因子,参与调控病毒基因表达;pp150和pp28则在病毒组装与释放过程中发挥关键作用[6]。
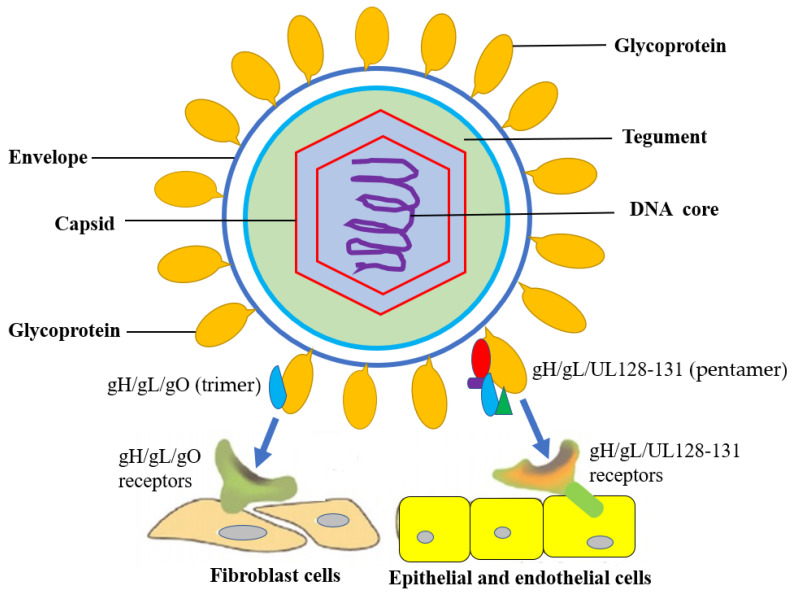
图2 巨细胞病毒结构特征(HCMV结构和进入宿主细胞)[7]
图示人巨细胞病毒(HCMV)的基本结构组成,包括外层包膜(envelope)、包膜糖蛋白(glycoprotein)、基质层(tegument)、二十面体衣壳(capsid)及内部DNA核心。图中同时显示了HCMV进入不同宿主细胞的关键糖蛋白复合体:gH/gL/gO三聚体主要介导病毒进入成纤维细胞,而gH/gL/UL128-131五聚体则主要参与病毒对上皮细胞和内皮细胞的感染。该图反映了HCMV结构特征及其宿主细胞嗜性的分子基础。
1.1.4分子生物学特征
人巨细胞病毒基因组庞大,编码多种病毒蛋白和分子,这些分子参与调控宿主的抗病毒免疫应答,成为其重要的分子生物学特征之一。HCMV在与宿主长期共存的过程中,进化出复杂的免疫调节机制,其中多种基因产物共同作用以抵抗宿主的抗感染免疫:一方面干扰主要组织相容性复合体(MHC)分子的抗原递呈,逃避T细胞的识别与清除;另一方面通过干扰干扰素信号转导、抑制自然杀伤细胞(NK)与树突状细胞的效应功能等方式,逃逸宿主的天然免疫应答。这些由病毒基因组编码的免疫调节因子,正是HCMV建立持续感染、潜伏与再激活的重要分子基础[8]。
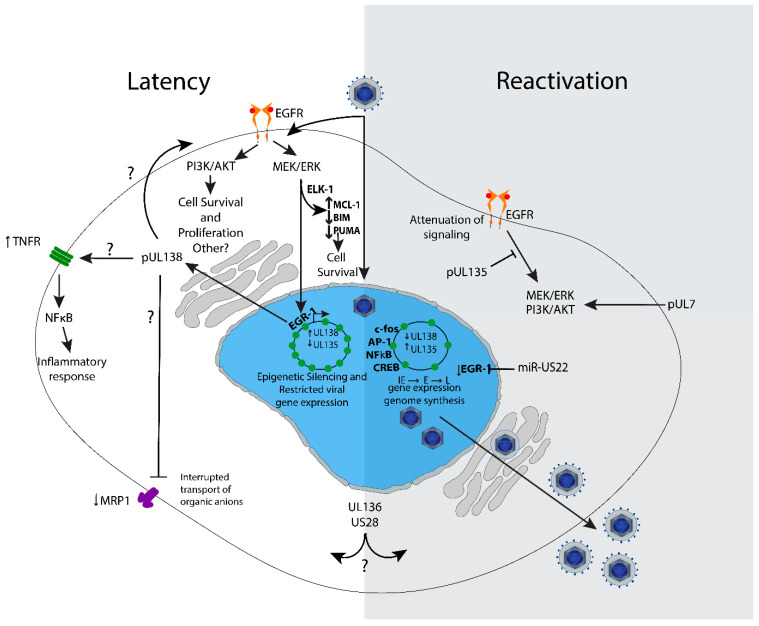
图3 UL133-UL138病毒-宿主相互作用和信号传导影响潜伏期和重新激活的模型[9]。
该图示意了人巨细胞病毒(HCMV)在潜伏与再激活过程中,UL133–UL138基因区域与宿主细胞信号通路之间的相互作用。图中显示,病毒可通过调控EGFR、PI3K/AKT、MEK/ERK、NF-κB等信号途径,影响宿主细胞的存活、增殖、炎症反应及病毒基因表达,从而维持潜伏感染状态或诱导病毒再激活。
1.2分布、传播与致病性
1.2.1分布与传播
巨细胞病毒在世界范围内广泛传播,全球一般人群中约有83%发生感染,其流行与社会经济水平关系密切。发达国家血清阳性率为40%-70%,我国血清阳性率为60%-97%。CMV原发感染后终身潜伏于人体中,当机体免疫力下降时再激活引起周期性发作。孕期发生感染的孕妇可将CMV通过胎盘垂直传播给胎儿,约10%-15%的先天性感染新生儿可能出现神经发育迟缓、黄疸、肝脾肿大、小头畸形、听力损失、视力损失等后遗症[10]。
1.2.2致病性
巨细胞病毒在感染机体后可在造血前体细胞及单核-髓系细胞中建立长期潜伏感染,当机体处于免疫抑制状态(如器官移植、化疗或HIV感染)时,病毒可被再激活,引发全身播散性感染,是重症CMV疾病的重要来源。此外,CMV编码的多种蛋白可通过抑制抗原呈递、调控NK细胞识别、干扰干扰素信号通路等机制逃避免疫清除,从而促进病毒在体内长期潜伏、周期性再激活及持续性感染,在免疫抑制人群中可导致间质性肺炎、肝炎、脑炎、视网膜炎及胃肠道疾病等多种终末器官损伤[11]。
。 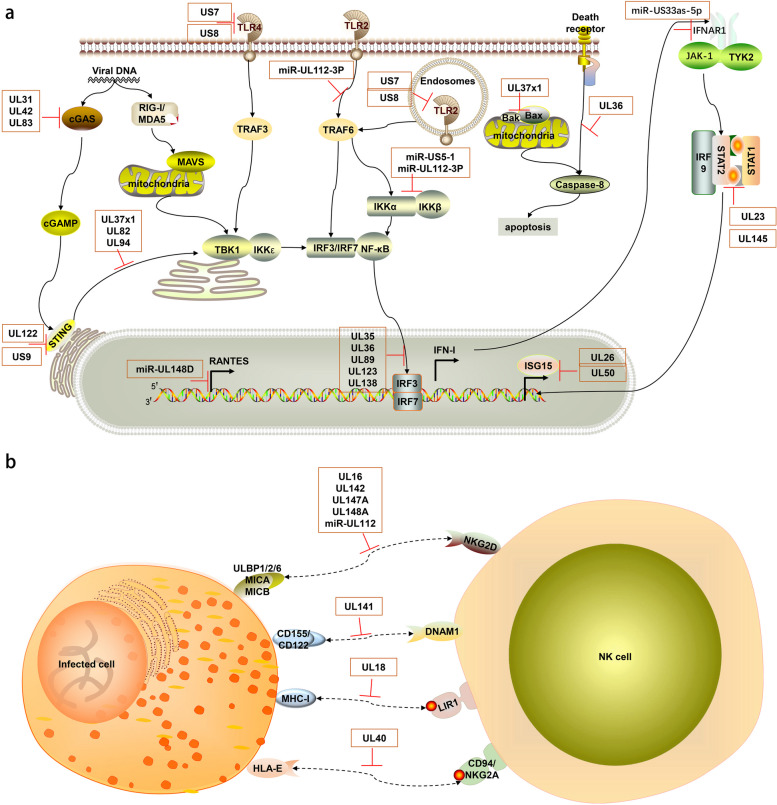
图4 病毒逃避自然杀伤细胞的机制[12]
A:人巨细胞病毒(HCMV)通过多种蛋白和miRNA抑制宿主的先天免疫反应B:HCMV逃避NK细胞反应。
1.3检测方法
- 实时荧光定量PCR(RT-qPCR)[13]:实时荧光定量PCR可用于定量检测临床样本中的巨细胞病毒(CMV)DNA,实现对血液、血浆、全血及体液样本中病毒载量的动态监测。其原理是提取临床样本中的核酸后,用针对CMV保守基因区(常见UL83、UL54、UL55等)的特异性引物与荧光探针进行扩增反应。在扩增过程中,TaqDNA聚合酶5’→3’外切酶活性裂解探针,释放荧光基团,从而实现荧光信号的实时累积检测。以UL83(pp65)区为例,常见的引物和探针序列见表1。
表1 巨细胞病毒RT-qPCR引物序列[13]
| 引物名称 | 序列(5′→3′) |
| 正向引物 | 5′-GTCAGCGTTCGTGTTTCCCA-3′ |
| 反向引物 | 5′-GGGACACAACACCGTAAAGC-3′ |
| 探针 | 5′-FAM-CCCGCAACCCGCAACCCTTCATG-TAMRA-3′ |
(2)pp65抗原检测:CMV pp65抗原血症可通过直接红细胞裂解和免疫荧光染色进行快速检测[14]。其原理是检测外周血白细胞中CMV主要基质蛋白pp65的表达:收集新鲜EDTA外周血,需在采样后6 h内处理,通过红细胞裂解或沉降法获得白细胞,制备玻片后进行固定与透化,再用抗CMVpp65单克隆抗体孵育,结合荧光或酶标二抗进行显色,最后在显微镜下计数核内或胞质内阳性细胞数,并以每2 × 10⁵白细胞中阳性细胞数作为结果。该方法的优点是能够直接反映病毒蛋白表达,即提示有病毒复制的活跃细胞,在一定程度上与临床疾病风险高度相关,且在设备要求较低的条件下仍可应用。
1.4典型案例
先天性CMV感染是最具代表性的病例类型之一。患儿常在出生时表现出小头畸形、脑室扩大、室周钙化、黄疸、肝脾肿大、出血点及神经系统异常等临床与影像学特征,实验室检查可见血小板减少和肝功能异常。产前超声可提示脑室扩大,出生后通过CT或颅脑超声进一步证实。该类病例凸显了先天性CMV的典型临床组合:多系统受累(神经系统+肝脾+血液),且在资源有限地区也能通过临床表现加以识别。在资源有限地区,先天性CMV感染可通过小头畸形、脑室扩大、室周钙化、黄疸、肝脾肿大、出血点及神经系统异常等多系统临床表现加以识别,影像学检查对诊断具有重要价值[15]。
另一类典型案例出现在原本健康的成人中,尽管罕见,却极具警示意义。文献报道一位免疫功能正常的女性患者,因原发CMV感染而出现严重的肺部损害和中枢神经系统受累,病程进展迅速,最终因多脏器功能衰竭而不幸死亡。另有报道指出,免疫健全成人可因CMV引发播散性血管内凝血(DIC),临床表现为凝血功能紊乱和多系统衰竭,虽然经抗病毒药物(如valganciclovir)治疗可获部分缓解,但病程依旧凶险。这类病例的典型意义在于提醒临床医生:即使在非免疫抑制人群中,CMV也可能导致严重甚至致命的并发症,不应仅将其视为免疫低下人群的“机会性感染”[16]。
1.5防治对策
巨细胞病毒防治策略主要针对高危人群,包括孕妇、移植患者及免疫受损者等。对于实体器官移植受者,CMV防治的核心策略包括“普遍预防”与“抢先治疗”。普遍预防通过术后常规使用抗病毒药物,可减少CMV病的发生,但存在白细胞减少和晚发性CMV风险;抢先治疗则通过监测病毒载量,在出现早期感染证据时启动治疗。CMV抗病毒治疗仍面临耐药性和治疗相关毒性等挑战[17]。
参考文献
[1] 吴新刚, 杨瑞馥. 巨细胞病毒检测与鉴定研究进展. 微生物学免疫学进展, 2003, 31: 66-70.
[2] 王雅, 陆秀英, 向诚 等.人巨细胞病毒在SL7细胞中的形态发生.病毒学杂志, 1988, 21-26.
[3] Dioverti MV, Razonable RR. Cytomegalovirus. Microbiology Spectrum, 2016, 4: DMIH2-0022-2015.
[4] Liu YT, Strugatsky D, Liu W et al. Structure of human cytomegalovirus virion reveals host tRNA binding to capsid-associated tegument protein pp150. Nature Communications, 2021, 12: 5513.
[5] Inayat F, Hussain Q, Shafique K et al. Cytomegalovirus colitis in immunocompetent patients. Cureus, 2016, 8: e869.
[6] 张文昌, 甘霖, 陈敬贤 等. 参与病毒裂解性复制周期的人巨细胞病毒皮层蛋白. 国际生物制品学杂志, 2014, 19-23.
[7] Chen SJ, Wang SC, Chen YC. Challenges, recent advances and perspectives in the treatment of human cytomegalovirus infections. Tropical Medicine and Infectious Disease, 2022, 7: 439.
[8] 陈艳, 侍效春, 刘晓清. 巨细胞病毒免疫逃逸机制研究进展. 中华实验和临床感染病杂志, 2023, 17: 73-78.
[9] Mlera L, Moy M, Maness K et al. The role of the human cytomegalovirus UL133-UL138 gene locus in latency and reactivation. Viruses, 2020, 12: 714.
[10] 殷梦曌, 秦刚. 巨细胞病毒疫苗预防先天性感染的数学模型研究进展. 中国感染与化疗杂志, 2023, 23: 765-770.
[11] 单幼兰, 张笋华, 陈伟华 等. 关于HCMV潜伏感染与激活感染研究的新进展. 现代生物医学进展, 2011, 11: 3382-3385.
[12] Shang Z, Li X. Human cytomegalovirus: pathogenesis, prevention, and treatment. Molecular Biomedicine, 2024, 5: 61.
[13] Gault E, Michel Y, Dehée A et al. Quantification of human cytomegalovirus DNA by real-time PCR. Journal of Clinical Microbiology, 2001, 39: 772-775.
[14] Ho SKN, Lo CY, Cheng IKP et al. Rapid cytomegalovirus pp65 antigenemia assay by direct erythrocyte lysis and immunofluorescence staining. Journal of Clinical Microbiology, 1998, 36: 638-640.
[15] Bert PJ, Narvaez Gaitan CA, Vasquez Vado VE. Congenital Cytomegalovirus in a Resource-Limited Setting: A Case Report. Cureus, 2024, 16: e62844.
[16] Anyfantakis D, Damianaki A, Krietsepi V et al. A fatal case of cytomegalovirus disease in an immunocompetent young woman: A case report. Le Infezioni in Medicina, 2018, 26: 164-166.
[17] 于潇, 孙毅, 郭文治. 实体器官移植后巨细胞病毒感染的间接效应及其防治策略. 中国感染与化疗杂志, 2023, 23: 261-264.